封面报道
线粒体视角下的皮肤衰老:
从结构修复走向能量医学
2026年10月13日 14:34
近两年的临床实践中,有一个显著的变化:越来越多的患者开始主动关注"细胞级抗衰"的相关话题。有人会拿着社交媒体上的内容前来求证,也有同行在学术会议上反复讨论这一概念——所以“细胞级抗衰”是营销话术,还是有科学依据呢?
客观来看,这个概念本身并无问题,问题在于很多人对它的理解存在偏差。细胞级抗衰并非玄学,它所描述的其实是一个朴素的道理:皮肤的年轻状态,归根到底取决于每一个细胞能否维持正常功能。细胞代谢良好、修复高效、信号传导通畅,皮肤自然呈现出健康状态;反之,一旦细胞功能衰退,再昂贵的护肤品也不过是表面文章。
沿着这一思路深入,便绕不开细胞中的关键角色——线粒体。
多数人对线粒体的认知仍停留在"细胞的能量工厂",但对皮肤细胞而言,线粒体承担的职责远不止供能这一项。它更像是细胞内部的调度中心,能量生产、氧化还原平衡、炎症信号、细胞命运决定——均与其直接相关。
从学术角度看,2023年López-Otín团队在Cell上发表了更新版的“衰老标志”综述[1],将原有的9个标志扩展至12个,其中线粒体功能障碍依然被列为独立标志,且与其他多个标志(如基因组不稳定、细胞衰老、慢性炎症)之间的交叉关系得到了进一步明确。无论是自然衰老还是光老化,线粒体功能障碍被认为是衰老过程中较早出现的重要细胞变化之一,并在细胞功能异常向组织层面老化表型转化过程中发挥关键作用,即“细胞内部功能异常”与“皮肤外观可见老化”的关键驱动因素之一。因此可以说,基于线粒体功能进行的研究,必然是“细胞级抗衰”的重要方向。
在现实生活中,有不少人抗衰效果始终不理想,深入分析后发现,问题往往不仅仅在皮肤结构层面,而是细胞的能量代谢本身已出现异常——这恰恰是线粒体功能障碍的表现。
由此引出两个核心问题:线粒体在皮肤细胞中究竟发挥着怎样的作用?它又为何会成为衰老链条上最先出现衰退的环节?
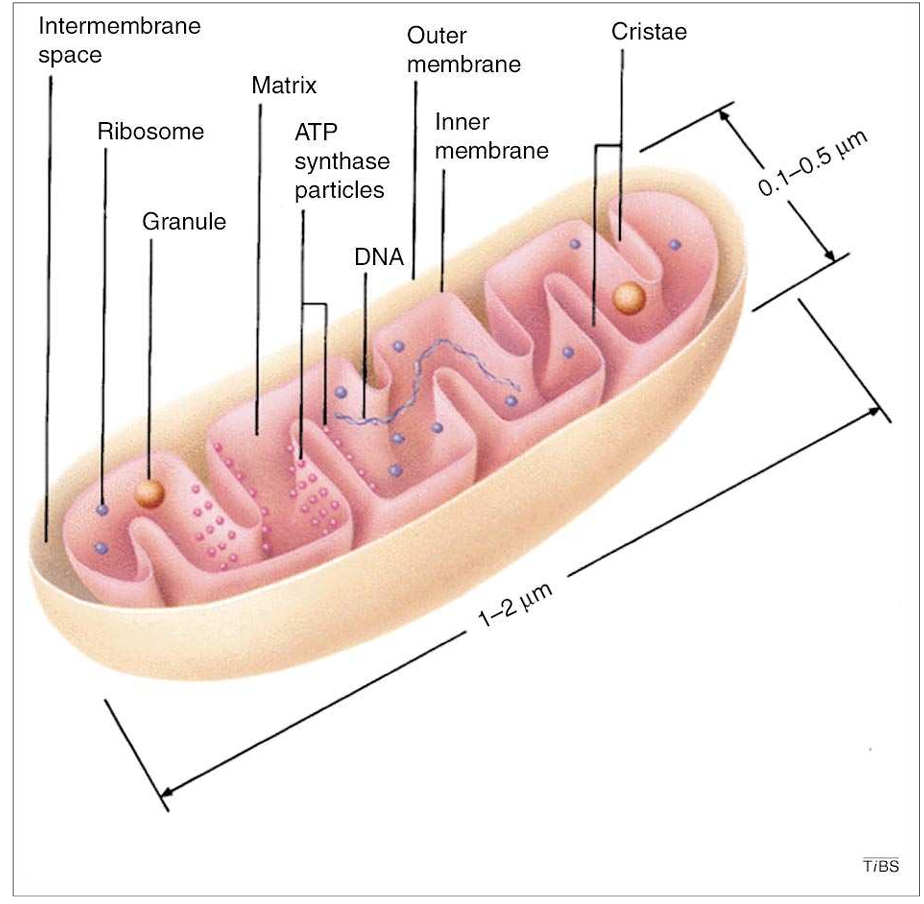
图1 线粒体结构(PMID:10871882)
课本中将线粒体定义为“细胞能量工厂”,负责通过氧化磷酸化产生ATP[1]。这一表述当然没错,但放在现代科研的环境,只是涵盖了其功能的一小部分。
皮肤可以说是人体中代谢非常活跃的器官之一。角质形成细胞从基底层分裂,逐步向上迁移至角质层脱落,整个周期约为28天[2];成纤维细胞需要持续合成胶原蛋白和弹性纤维以维持皮肤弹性[3];黑素细胞则须精准调控黑色素的合成与分布,否则肤色便会出现不均[4]。这些生理活动无一不是高耗能过程,在多数有氧条件下,细胞所需ATP主要由线粒体氧化磷酸化产生。也就是说,线粒体一旦出现功能障碍,皮肤细胞的再生、修复与代谢都将受到影响。
然而,线粒体的功能远不止于此。它还同时承担着三项对皮肤极为重要的任务:
- 调控氧化还原平衡[5,6]:适量的活性氧(ROS)本身是正常的信号分子,参与角质细胞分化、伤口修复、黑色素合成等过程。问题在于"过量"——一旦ROS失控,便成为氧化应激的源头,直接损伤蛋白质、脂质和核酸。而线粒体既是ROS的主要产生来源,也是调节ROS水平的关键"闸门",依靠自身的抗氧化系统维持动态平衡。
- 决定细胞的命运[7,8]:细胞凋亡、自噬、炎症通路的启动与关闭,线粒体均参与其中。严重受损的线粒体会触发凋亡程序,使细胞有序退出;而损伤较轻时,若自噬清除机制未能及时跟进,受损细胞则会持续滞留,逐步累积出衰老表型。
- 协调细胞间的协作[9,10]:皮肤并非单一细胞类型的独立运作,角质形成细胞、成纤维细胞、黑素细胞、免疫细胞等多种细胞的协同配合,在很大程度上依赖线粒体代谢过程中产生的信号分子。线粒体状态一旦紊乱,细胞间的信号传导便容易出现障碍。
值得关注的是,近年研究还发现了一个重要现象——线粒体可以在细胞之间发生转移。细胞通过隧道纳米管(tunneling nanotubes)等结构,将功能正常的线粒体传递给受损的邻近细胞,帮助其恢复能量供应[11,12]。这表明皮肤细胞之间的协作程度远比此前认知的更为深入,也为未来的干预策略提供了新的思路。
此外,线粒体还具备一种独立于经典自噬的质量控制途径——线粒体来源囊泡(MDVs)。受损的线粒体碎片可被包裹成小囊泡运至溶酶体降解,无需对整个线粒体进行清除[13,14]。这一系统一旦出现异常,同样会加速线粒体功能的恶化。
因此,与其将线粒体简单定义为“能量工厂”,不如称之为皮肤细胞的“能量与信号调度中心”。
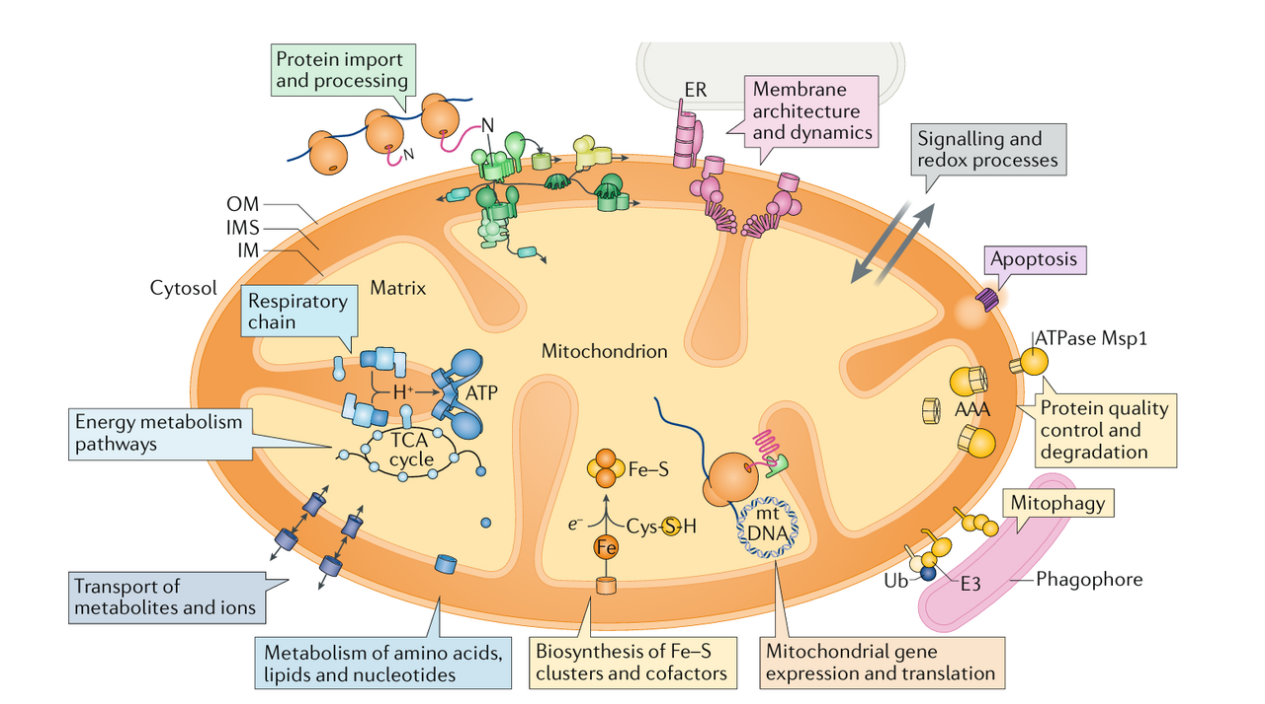
图2 线粒体及其功能概述(PMID:30626975)
这可以从线粒体自身的结构特点谈起。
线粒体拥有独立的DNA(mtDNA),但与细胞核DNA相比,mtDNA缺乏组蛋白保护,修复酶系的效率也明显不足[15]。而线粒体恰恰又是ROS的主要产生部位,mtDNA紧邻电子传递链,长期暴露于高浓度ROS环境中,氧化损伤和突变的累积几乎不可避免[16]。
更为关键的是,正常情况下细胞具备一套质量控制机制来处理受损线粒体——即**PINK1/Parkin介导的线粒体自噬(mitophagy)**通路。其基本原理是:当线粒体膜电位下降、功能出现异常时,PINK1蛋白在其表面积累,招募Parkin蛋白为其标记“待清除”标签,随后由自噬体将其吞噬并回收[17,18]。然而随着年龄增长,这一通路的效率逐渐降低,应被清除的受损线粒体不断积累。
在此基础上,日常生活中的多种不利因素还会进一步加重这一过程:
- 紫外线(尤其UVB)能直接损伤mtDNA,同时刺激ROS大量产生
- PM2.5及部分环境污染物可通过毛囊通道或受损屏障进入皮肤,并诱导线粒体氧化应激
- 熬夜、高糖饮食、睡眠不足会打乱线粒体的代谢节律
- 长期精神压力则通过神经-内分泌-免疫这条通路,间接拖累线粒体
- 近年研究还发现,皮肤线粒体的功能存在昼夜节律[19,20]——白天DNA修复较为活跃,夜间能量代谢效率更高。长期作息紊乱的影响并不仅限于睡眠不足,它还会直接扰乱线粒体的生物钟。
随着年龄增长以及上述损伤因素的持续叠加,线粒体会逐渐出现数量减少、网络碎片化、膜电位下降、mtDNA突变累积等一系列变化。这些变化在短期内可能尚无明显的外观表现,但皮肤的代谢和修复能力已在悄然下降——可以将这一阶段称为"功能性衰老":虽然尚未出现明显的皱纹等体征,但细胞层面的功能基础已开始动摇。
临床上所见的大多数衰老表现,究其根本几乎都可以找到线粒体功能失衡的身影。其影响主要体现在四个层面,且彼此之间互相加重,形成恶性循环:
- 能量供应不足[21]:ATP产量下降,最直接的后果是皮肤自我维护能力的减弱。角质细胞更新减慢,屏障脂质合成不足,皮肤易出现敏感、干燥;成纤维细胞合成胶原的效率无法跟上降解速度,弹性逐步丧失,细纹随之出现。
- 氧化应激失控[22]:受损线粒体无法有效调控ROS,导致其持续积累。过量的ROS会上调基质金属蛋白酶(MMPs),加速胶原和弹力纤维的降解,进一步加重松弛与皱纹。同时,ROS还会干扰黑素细胞的正常功能,导致黑色素合成紊乱、分布不均,出现暗沉、色斑及炎症后色素沉着。
- 细胞清除机制失效[8]:线粒体功能异常与细胞自噬系统的效率下降互为因果,导致本应当被清除的受损线粒体持续滞留于细胞内,持续释放炎症信号。皮肤局部由此出现低度慢性炎症状态,反过来又进一步损伤线粒体,形成“炎症促衰老、衰老加重炎症”的恶性循环。
- 衰老的"旁分泌传播":持续损伤和慢性炎症会将越来越多的皮肤细胞推入衰老状态。2023年Victorelli团队在Nature上发表了一项重要发现[23]:衰老细胞在凋亡应激时会释放线粒体DNA片段至细胞外,而这些游离的mtDNA本身即为强效炎症信号,可驱动SASP因子的分泌。也就是说,线粒体不仅在细胞内部出现了功能异常,其释放的DNA片段还会在细胞外引发炎症反应。这些衰老细胞并非处于静默状态,而是通过SASP因子将周围正常细胞推向衰老方向,导致皮肤整体状态共同下降。
此外还有一个近年被正式命名的概念值得关注——MiDAS(线粒体功能障碍相关衰老)[24]。与经典的复制性衰老不同,MiDAS是由线粒体功能障碍特异性触发的一类细胞衰老,其产生的SASP谱系也具有独特特征,以促炎和促纤维化因子为主。在皮肤科的语境下,这或许可以解释为何部分患者的皮肤衰老以炎症和纤维化为主要表现。
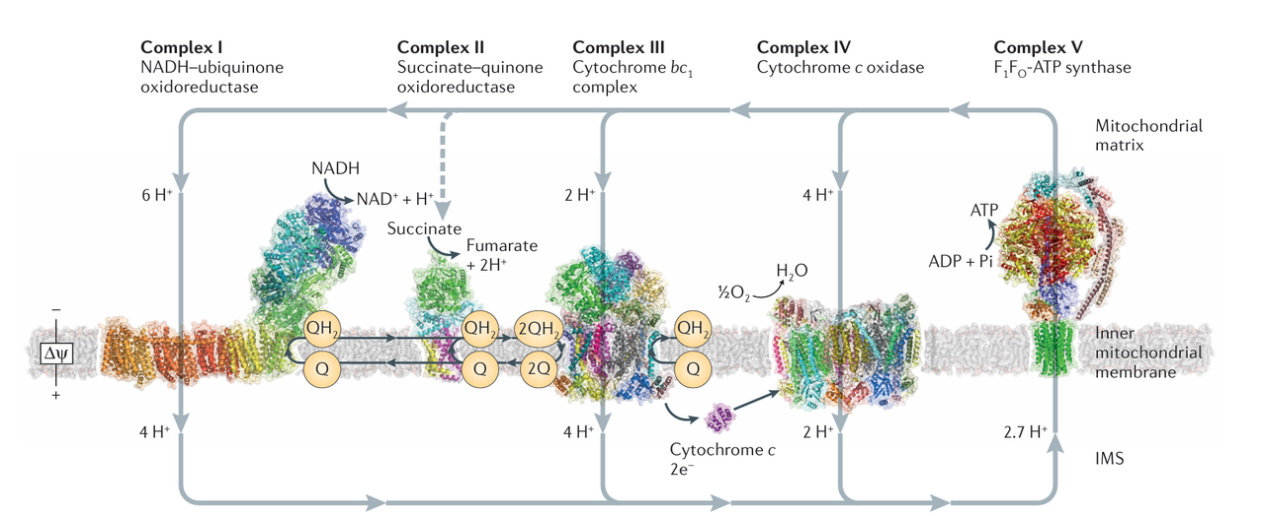
图3 电子传递链(PMID:25991374)
明确了线粒体在衰老中的核心角色之后,抗衰策略的思路也随之清晰。我们在临床实践中逐步形成了一套"保护—修复—重建"的干预路径,虽非全新创造,但相较于单纯的结构修复,在理论基础上更为扎实:
第一步,保护——减少线粒体损伤。 防晒仍然是最基本也最有效的措施,能够减少紫外线对mtDNA的直接伤害,降低ROS的产生。此外,控制高糖饮食、保障充足睡眠、减少污染物暴露,均有助于减轻线粒体的负担。
第二步,修复——控制已有的氧化应激与炎症。 与传统的“抗氧化”理念有所不同,我们更强调线粒体靶向的抗氧化策略,如辅酶Q10、褪黑素、多酚类等研究较为充分的活性成分。同时辅以甘草酸二钾、神经酰胺等抗炎成分,缓解炎症对线粒体的持续刺激。
第三步,重建——促进线粒体功能恢复。 这是难度最大也最具前沿性的部分。以下几个方向值得重点关注:
- NAD⁺补充:NAD⁺水平随年龄下降是线粒体功能衰退的重要原因之一。除经典的烟酰胺外,近年NMN(烟酰胺单核苷酸)和NR(烟酰胺核糖)的研究进展较为迅速。2023年的一项临床试验表明[25],口服NMN可提升中老年人体内NAD⁺水平并改善部分代谢指标。虽然针对皮肤的直接证据仍在积累之中,但研究方向是明确的。
- 尿石素A(Urolithin A):这是近年来备受关注的一种新型活性成分。它是石榴等食物中鞣花酸的肠道代谢产物,能够特异性激活线粒体自噬,促进受损线粒体的清除。2019年Andreux团队发表的临床研究证实了其在改善线粒体功能和肌肉健康方面的效果[26],皮肤领域的相关应用研究也在积极推进中。
- Senolytic策略:既然衰老细胞(尤其是MiDAS型衰老细胞)是问题的重要来源,那么直接清除这些衰老细胞是否可行?Senolytic(衰老细胞清除剂)正是基于这一思路。达沙替尼+槲皮素(D+Q)组合在动物实验中已显示出改善皮肤衰老的潜力[27],尽管临床转化尚处于早期阶段,但值得持续关注。
此外,适度的光生物调节治疗以及B族维生素等基础营养支持同样具有一定的辅助价值。
近两年来,一个日益清晰的趋势是:皮肤衰老的认知框架正在被重新定义。过去我们习惯将其视为一个“外观问题”——皱纹明显了进行注射填充,松弛了进行提升治疗。这些手段固然有效,但本质上属于下游的补救性干预。
当前的发展方向是向上游延伸。皮肤老化的根源并不在皮肤表面,而在细胞内部——能量代谢出现异常,信号调控发生紊乱,自我修复能力逐渐不足。这些才是真正需要干预的核心环节。
对临床工作者而言,这意味着抗衰目标可能需要进行相应调整:不仅要消除已经出现的衰老表现,更要帮助皮肤恢复自主维护的能力——正常的代谢运转,及时的损伤修复,稳定的屏障功能。
可以审慎乐观地预期,随着线粒体相关研究的不断深入和临床转化的推进,皮肤抗衰有望从“延缓外观变化”真正迈向“维持组织健康”。这一进程仍需时日,但方向应当是正确的。
参考文献:
[1] López-Otín C, Blasco MA, Partridge L, Serrano M, Kroemer G. Hallmarks of aging: An expanding universe. Cell. 2023;186(2):243–278.
[2] Nolfi-Donegan D, Braganza A, Shiva S. Mitochondrial electron transport chain: oxidative phosphorylation, oxidant production, and methods of measurement. Redox Biol. 2020;37:101674.
[3] Proksch E, Brandner JM, Jensen JM. The skin: an indispensable barrier. Exp Dermatol. 2008;17(12):1063–1072.
[4] Gardeazabal L, Izeta A. Elastin and collagen fibres in cutaneous wound healing. Experimental Dermatology, 2024, 33(3): e15052.
[5] Bao M, Gempeler M, Campiche R. Melanosome transport and processing in skin pigmentation: mechanisms and targets for pigmentation modulation. International Journal of Molecular Sciences, 2025, 26(17): 8630.
[6] Sies H, Jones DP. Reactive oxygen species (ROS) as pleiotropic physiological signalling agents. Nat Rev Mol Cell Biol. 2020;21(7):363–383.
[7] Seitz R, Müller M, Gülow K. Extracellular Redox Balance as a Determinant of Immune Regulation and Tissue Inflammation. Antioxidants, 2026, 15(3): 280.
[8] Bock FJ, Tait SWG. Mitochondria as multifaceted regulators of cell death. Nat Rev Mol Cell Biol. 2020;21(2):85–100.
[9] Khan S U, Fatima K, Aisha S, et al. Redox balance and autophagy regulation in cancer progression and their therapeutic perspective. Medical Oncology, 2022, 40(1): 12.
[10] Quan T, Li R, Gao T. Role of mitochondrial dynamics in skin homeostasis: an update. International Journal of Molecular Sciences, 2025, 26(5): 1803.
[11] Torralba D, Baixauli F, Sánchez-Madrid F. Mitochondria know no boundaries: Mechanisms and functions of intercellular mitochondrial transfer. Front Cell Dev Biol. 2016;4:107.
[12] Liu D, et al. Intercellular mitochondrial transfer as a means of tissue revitalization. Signal Transduct Target Ther. 2021;6:65.
[13] Soubannier V, McLelland GL, Zunino R, et al. A vesicular transport pathway shuttles cargo from mitochondria to lysosomes. Curr Biol. 2012;22(2):135–141.
[14] König T, et al. Mitochondrial-derived vesicles in metabolism, disease, and aging. Cell Metab. 2024;36(1):21–42.
[15] Alexeyev M, Shokolenko I, Wilson G, et al. The maintenance of mitochondrial DNA integrity—critical analysis and update. Cold Spring Harb Perspect Biol. 2013;5(5):a012641.
[16] Wallace DC. Mitochondrial DNA mutations in disease and aging. Environ Mol Mutagen. 2010;51(5):440–450.
[17] Pickles S, Vigié P, Bhatt H, et al. Mitophagy and quality control mechanisms in mitochondrial maintenance. Curr Biol. 2018;28(4):R170–R185.
[18] Markaki M, Tavernarakis N. Mitochondrial turnover and homeostasis in ageing and neurodegeneration. FEBS Lett. 2020;594(15):2370–2379.
[19] Peek CB, Levine DC, Cedernaes J, et al. Circadian clock interaction with HIF1α mediates oxygenic metabolism and anaerobic glycolysis in skeletal muscle. Cell Metab. 2017;25(1):86–92.
[20] Wilking M, et al. Circadian rhythm connections to oxidative stress: Implications for human health. Antioxid Redox Signal. 2013;19(2):192–208.
[21] Martic I, Papaccio F, Bellei B, et al. Mitochondrial dynamics and metabolism across skin cells: implications for skin homeostasis and aging. Frontiers in Physiology, 2023, 14: 1284410.
[22] Fisher GJ, Kang S, Varani J, et al. Mechanisms of photoaging and chronological skin aging. Arch Dermatol. 2002;138(11):1462–1470.
[23] Victorelli S, Lagnado A, Halim J, et al. Apoptotic stress causes mtDNA release during senescence and drives the SASP. Nature. 2023;622:627–636.
[24] Wiley CD, Velarde MC, Lecot P, et al. Mitochondrial dysfunction induces senescence with a distinct secretory phenotype. Cell Metab. 2016;23(2):303–314.
[25] Yi L, Maier AB, Tao R, et al. The efficacy and safety of β-nicotinamide mononucleotide (NMN) supplementation in healthy middle-aged adults: A randomized, multicenter, double-blind, placebo-controlled, parallel-group, dose-dependent clinical trial. GeroScience. 2023;45(1):29–43.
[26] Andreux PA, Blanco-Bose W, Ryu D, et al. The mitophagy activator urolithin A is safe and induces a molecular signature of improved mitochondrial and cellular health in humans. Nat Metab. 2019;1:595–603.
[27] Xu M, Pirtskhalava T, Farr JN, et al. Senolytics improve physical function and increase lifespan in old age. Nat Med. 2018;24(8):1246–1256.
本文作者为浙江省人民医院皮肤科副主任医师、美容主诊医师,医学硕士、副教授樊莎莎。樊莎莎医生从事皮肤科临床、教学与科研工作 17年,主攻损容性皮肤病、过敏性皮肤病、银屑病及皮肤激光美容方向。本文由山东大学齐鲁医学院教授、博士生导师郝爱军复核。Bioπ中国美肤科学传播平台发布本文只是为了更多的信息参考,不代表任何有倾向性的投资意见或市场暗示。

THE END

京公网安备11010502058609号